Our website has a fresh new "look"
We've updated our site with modern design and easier navigation, but you'll still find the same quality Dharmacon™ reagents and Mimix™ reference standards that you love.
Pin-point™塩基編集mRNA
|
Pin-point塩基編集mRNAは、ニッカーゼCas9のDNA標的化能力と、アデニンまたはシチジンデアミナーゼによる塩基編集活性を利用し、Pin-point合成sgRNAと組み合わせて使用することで標的点突然変異を導入します。すべてのmRNAは、5-methoxy-uridine(5moU)修飾版または未修飾版から選択できます。 Pin-point ABE nCas9 mRNA Pin-point ABE nCas9 mRNAは、5’および3’核局在化シグナル(NLS)を有する Streptococcus pyogenes 由来ニッカーゼCas9(D10A)のヒトコドン最適化配列をコードしています。本mRNAはin vitro転写により調製され、CleanCap AGによりキャッピングされるとともに、ポリA化されています。翻訳後のタンパク質は核内へ局在します。 Pin-point ABE-flexおよびABE-exactデアミナーゼmRNA Pin-point ABE-flexおよびABE-exactデアミナーゼmRNAは、Profluent社の最先端AIモデルを活用して設計され、A-to-G塩基編集において良好な活性が得られることが生物学的に評価されています。本mRNAはin vitro転写により調製され、CleanCap AGによりキャッピングされるとともに、ポリA化されています。翻訳後のタンパク質は核内へ局在します。 Pin-point CBE nCas9 mRNA Pin-point CBE nCas9 mRNAは、5’および3’核局在化シグナル(NLS)を有する Streptococcus pyogenes 由来ニッカーゼCas9(D10A)に、ウラシルDNAグリコシラーゼ阻害因子(UGI)配列を融合したヒトコドン最適化配列をコードしています。本mRNAはin vitro転写により調製され、CleanCap AGによりキャッピングされるとともに、ポリA化されています。翻訳後のタンパク質は核内へ局在します。 Pin-point CBE rAPOBECデアミナーゼmRNA Pin-point CBE rAPOBECデアミナーゼmRNAは、5’核局在化シグナル(NLS)を有するアプタマー結合タンパク質とシチジンデアミナーゼ塩基編集酵素の融合体をコードしています。本製品は、幅広いヒト細胞種における塩基編集用途で評価されています。本mRNAはin vitro転写により調製され、CleanCap AGによりキャッピングされるとともに、ポリA化されています。翻訳後のタンパク質は核内へ局在します。 |
CBEまたはABE向けカスタムPin-point sgRNAを設計・ご注文いただけます。
|
Pin-pointプラットフォームによる塩基編集は、DNA二本鎖切断やindelを生じることなく、特定の塩基変換を誘導します。
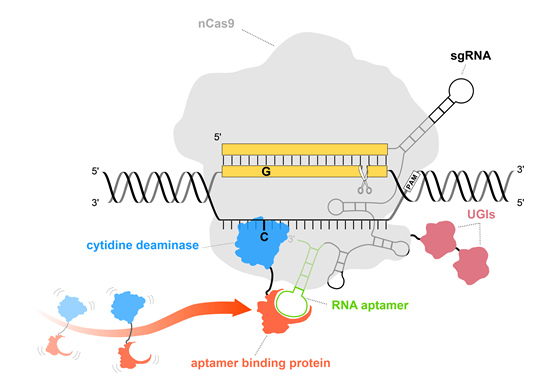
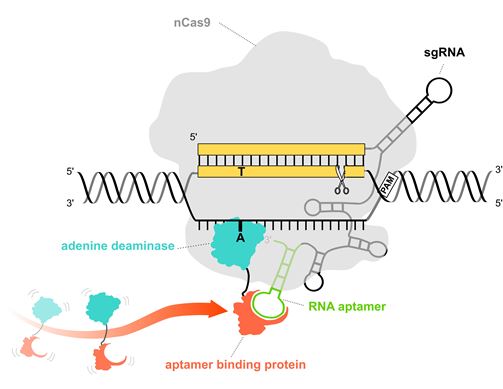
本システムは、以下の3つの構成要素から成ります。
[1] ヌクレアーゼ活性を失わせたニッカーゼ(nCas9)。DNAの一本鎖のみを切断します。シトシン塩基編集(CBE)では、nCas9にウラシルDNAグリコシラーゼ阻害因子(UGI)配列が融合されています。一方、アデニン塩基編集(ABE)では、nCas9にUGIは融合されていません。
[2] アプタマー結合タンパク質と融合したシチジンデアミナーゼ(rAPOBEC)またはアデニンデアミナーゼ(ABE-flexまたはABE-exact)。rAPOBECは、プロトスペーサーのPAM遠位側に位置する編集ウィンドウ(4~8番目の塩基)内のC-G塩基対をT-A塩基対へ変換します。ABE-flexは塩基編集ウィンドウ内の4~8番目のA-T塩基対をG-C塩基対へ変換し、ABE-exactは5~6番目のA-T塩基対をG-C塩基対へ変換します。
[3] nCas9およびアプタマー-デアミナーゼ融合タンパク質を特定のDNA標的部位へ誘導するアプタマー型シングルガイドRNA(sgRNA)。
|
|
Pin-point塩基編集システムの模式図
UGI(赤)を融合した、または融合していないnCas9(薄灰色)を使用することで、DNA二本鎖切断を生じさせることなく塩基編集を行うことができます。そのため、DNA損傷応答経路は活性化されません。Pin-point sgRNAにはアプタマー(緑)が含まれており、アプタマー結合タンパク質(オレンジ)を介してデアミナーゼ(青:シチジンデアミナーゼ、水色:アデニンデアミナーゼ)を標的部位へ誘導することで塩基編集を実現します。
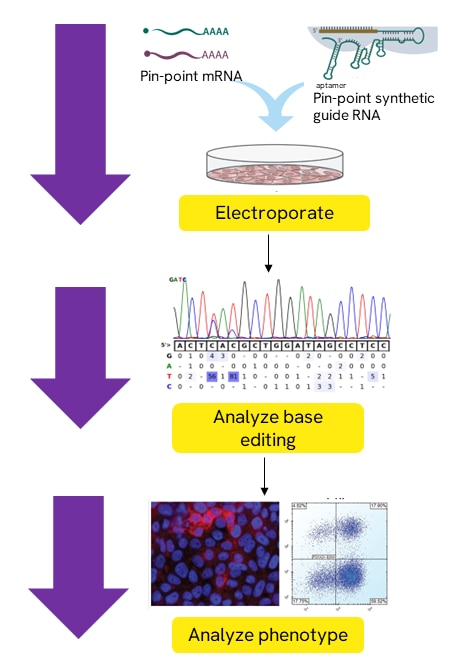
Pin-point ABEまたはCBE nCas9 mRNA、Pin-point ABEまたはCBEデアミナーゼmRNA、およびPin-point合成sgRNAによる塩基編集。
3つの構成要素すべてを目的の細胞へエレクトロポレーションにより導入します。その後、解析プライマーを用いて目的領域を増幅およびシーケンス解析し、塩基編集を評価します。必要に応じて表現型解析を行い、標的タンパク質のノックアウトを評価できます。
Table 1: Pin-point未修飾mRNAとPin-point 5moU修飾mRNAはどちらを選択すべきですか?
| 細胞種ごとのPin-point mRNA推奨使用条件 | |
| HEK293T細胞 | 未修飾 |
| 初代ヒトT細胞 | 未修飾 |
| iPS細胞(iPSC) | 未修飾 |
| 造血幹・前駆細胞(HSPC) | 5moU修飾 |
Table 2: Pin-point ABE mRNA必要量
| ウェルごとの反応数/フォーマットサイズ* |
|||||||||||
| T細胞 (250,000細胞/ウェル、24ウェルプレート) |
iPS細胞(iPSC) (100,000細胞/ウェル、12ウェルプレート) |
HSPC (50,000細胞/ウェル、96ウェルプレート) |
|||||||||
| ABE nCas9 mRNA | ABE-exact deaminase mRNA | ABE-flex deaminase mRNA | ABE nCas9 mRNA | ABE-exact deaminase mRNA | ABE-flex deaminase mRNA | ABE nCas9 mRNA | ABE-exact deaminase mRNA | ABE-flex deaminase mRNA |
|||
| 1.5 μg/well | 1 μg/well | 0.1 μg/well | 1 μg/well | 1 μg/well | 0.1 μg/well | 1.5 μg/well |
1 μg/well | 0.4 μg/well | |||
| 10 μg (2 μg/μL) | - | 10 | 100 | - | 10 | 100 | - | 10 | 25 | ||
| 20 μg (2 μg/μL) | 13 | 20 | 200 | 20 | 20 | 200 | 13 | 20 | 50 | ||
| 100 μg (2 μg/μL) | 67 | 100 | 1000 | 100 | 100 | 1000 | 67 | 100 | 250 |
||
| 500 μg (2 μg/μL) | 333 | - | 500 | - | - | 333 | - | - |
|||
Table 3:Pin-point CBE mRNA必要量
| ウェルごとの反応数/フォーマットサイズ* |
||||||||||
| T細胞 (250,000細胞/ウェル、24ウェルプレート) |
iPS細胞(iPSC) (100,000細胞/ウェル、12ウェルプレート) |
HSPC (50,000細胞/ウェル、96ウェルプレート) |
HEK293T細胞 (50,000細胞/ウェル、96ウェルプレート) |
|||||||
| CBE nCas9 mRNA |
CBE rAPOBEC deaminase mRNA | CBE nCas9 mRNA | CBE rAPOBEC deaminase mRNA | CBE nCas9 mRNA | CBE rAPOBEC deaminase mRNA | CBE nCas9 mRNA | CBE rAPOBEC deaminase mRNA | |||
| 1.56 μg/well |
0.22 μg/well
|
2.56 μg/well | 0.4 μg/well | 2.8 μg/well | 2 μg/well | 1 μg/well | 0.1 μg/well | |||
| 20 μg (2 μg/μL) |
12 | 90 | 8 | 50 | 7 | 10 | 20 | 200 | ||
| 100 μg (2 μg/μL) | 64 | 450 | 39 | 250 | 36 | 50 | 100 | 1000 | ||
| 500 μg (2 μg/μL) |
320 | 2252 | 195 | 1250 | 179 | 250 | 500 | 5000 | ||
Table 4: Pin-point sgRNA必要量
| ウェルごとの反応数/フォーマットサイズ* |
||||||||||
| T細胞 (250,000細胞/ウェル、24ウェルプレート) |
iPS細胞(iPSC) (100,000細胞/ウェル、12ウェルプレート) |
HSPC (50,000細胞/ウェル、96ウェルプレート) |
HEK293T細胞 (50,000細胞/ウェル、96ウェルプレート) |
|||||||
| CBE |
ABE | CBE | ABE | CBE | ABE | CBE | ||||
| 20 pmol/well |
20 pmol/well
|
40 pmol/well | 40 pmol/well | 62.5 pmol/well | 62.5 pmol/well | 60 pmol/well | ||||
| 2 nmol | 100 | 100 | 50 | 50 | 32 | 32 | 33 | |||
| 5 nmol | 250 | 250 | 125 | 125 | 80 | 80 | 83 | |||
| 10 nmol | 500 | 500 | 250 | 250 | 160 | 160 | 167 | |||
その他の Supporting Data please see our Pin-point Synthetic sgRNA Validated Controls, Pin-point Synthetic sgRNA Non-targeting Controls, または Custom Pin-point Synthetic sgRNA の各ページをご覧ください。
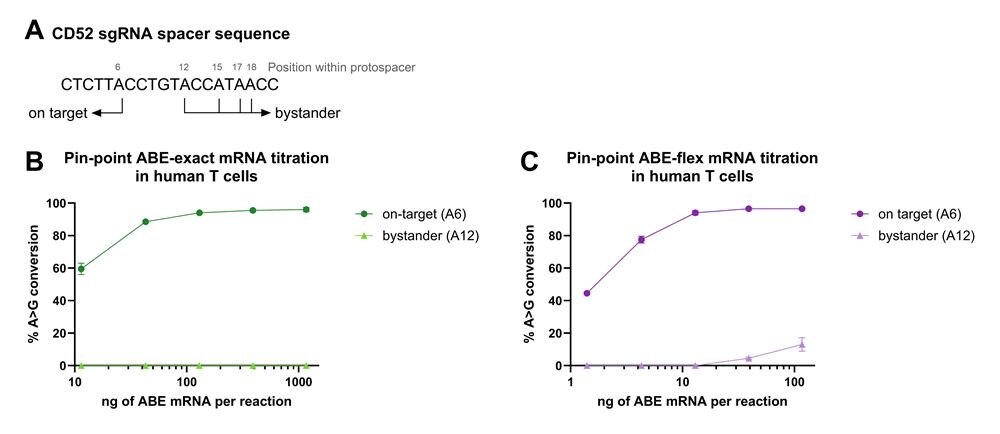
Figure 1: CD52遺伝子座におけるPin-point ABEプラットフォームを用いた活性化ヒトT細胞での塩基編集
(A)CD52 sgRNAスペーサー配列。数字はスペーサー内の位置を示します。A6はスプライスドナー変異およびタンパク質ノックアウトを誘導する標的位置であり、その他のAは本例ではバイスタンダー変異に相当します。(B-C)標的A(6)およびバイスタンダーA(12)における、Pin-point ABE-exact(B)またはABE-flex(C)のmRNA量を変化させた際の塩基編集レベル。Pin-point ABE nCas9 mRNAおよび合成sgRNAの使用量は一定としました。A-to-G変換率は、Pin-point解析プライマーを用いて得られたPCR産物のサンガーシーケンス解析により算出しました。N=2テクニカルレプリケート。プロットは平均値 ± SDを示します。

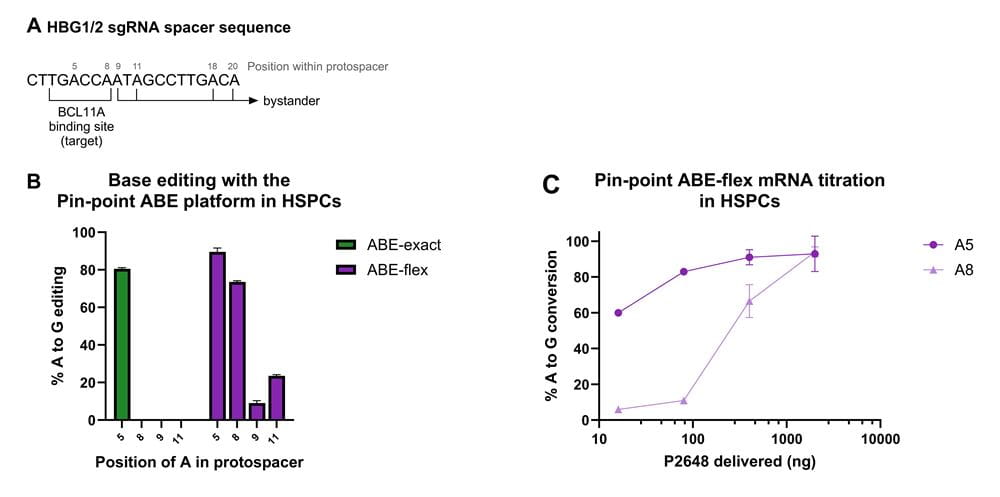
Figure 2: HBG1/2プロモーター領域におけるPin-point ABEプラットフォームを用いた造血幹・前駆細胞(HSPC)での塩基編集
(A)HBG1/2 sgRNAスペーサー配列。A5およびA8はBCL11A結合部位内に位置します。他のAはバイスタンダー変異に相当します。(B)nCas9 ABE mRNA、ABE-exactまたはABE-flexデアミナーゼmRNA、およびHBG1/2合成sgRNAコントロールを用いた塩基編集レベル。バーは平均値 ± SDを示します。N=2テクニカルレプリケート。(C)HSPCにおけるPin-point ABE-flex mRNAの用量検討。Pin-point ABE nCas9 mRNAおよび合成sgRNAの使用量は一定としました。A-to-G変換率は、Pin-point解析プライマーを用いて得られたPCR産物のサンガーシーケンス解析により算出しました。N=2テクニカルレプリケート。バーおよびプロットは平均値 ± SDを示します。
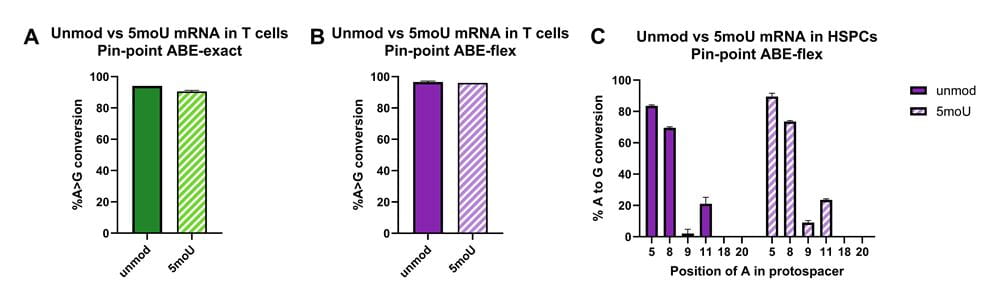
Figure 3:Pin-point ABE mRNA修飾が塩基編集レベルに与える影響の評価
(A)未修飾または5moU修飾ABE nCas9 mRNAおよびABE-exactデアミナーゼmRNAを、Pin-point CD52合成sgRNA ABE検証済みコントロールとともに、活性化ヒトT細胞へエレクトロポレーションにより導入しました。(B)未修飾または5moU修飾ABE nCas9 mRNAおよびABE-flexデアミナーゼmRNAを、Pin-point CD52合成sgRNA ABE検証済みコントロールとともに、活性化ヒトT細胞へエレクトロポレーションにより導入しました。(C)未修飾または5moU修飾ABE nCas9 mRNAおよびABE-flexデアミナーゼmRNAを、Pin-point HBG1/2合成sgRNA ABE検証済みコントロールとともに、HSPCへエレクトロポレーションにより導入しました。A-to-G変換率は、Pin-point解析プライマーを用いて得られたPCR産物のサンガーシーケンス解析により算出しました。N=2テクニカルレプリケート。バーは平均値 ± SDを示します。
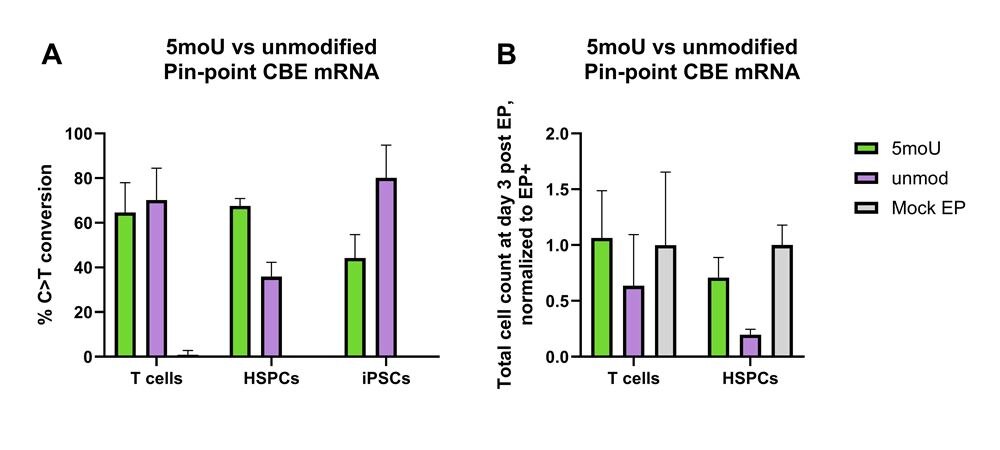
Figure 4:T細胞、造血幹・前駆細胞(HSPC)、およびiPS細胞(iPSC)における未修飾または5moU修飾mRNAを用いたPin-point CBE塩基編集
主要組織適合遺伝子複合体クラスI(MHCクラスI)α鎖を標的とするカスタムPin-point合成sgRNAと、Pin-point未修飾またはPin-point 5moU修飾CBE mRNAを、活性化ヒトT細胞、iPSCおよびHSPCへ導入した条件で評価しました。(A)代表的な編集率および(B)エレクトロポレーション3日後の総細胞数を示しています。

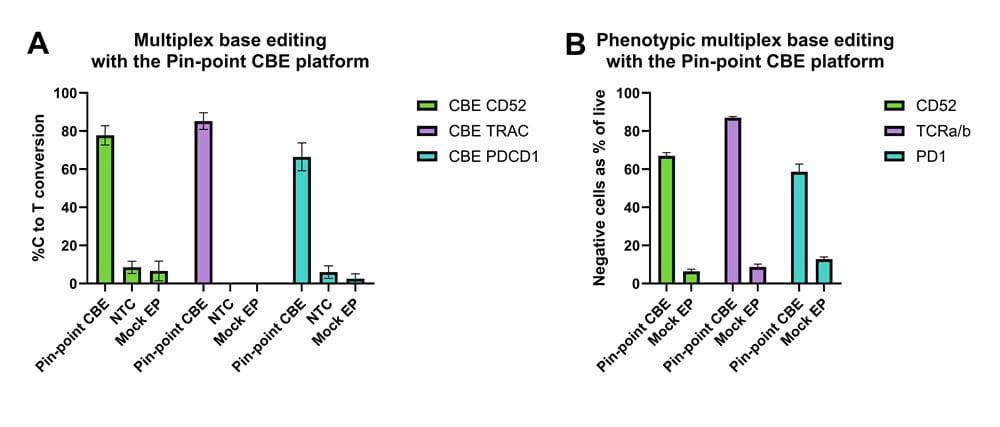
Figure 5: ヒトT細胞におけるPin-point CBEプラットフォームを用いたマルチプレックス塩基編集
活性化ヒトT細胞に、3つの標的(CD52、PDCD1、TRAC)に対するPin-point CBE mRNAおよびPin-point合成sgRNA CBE検証済みコントロール、またはノンターゲティングコントロール(NTC #1)sgRNAをエレクトロポレーションにより導入しました。モックエレクトロポレーション(EP)細胞をネガティブコントロールとして使用しました。(A)細胞をエレクトロポレーション後6~7日で回収し、Pin-point解析プライマーを用いて得られたPCR産物のサンガーシーケンスデータから塩基編集レベルを算出しました。T細胞ドナー8名、5回の独立実験を実施し、各実験は2~3回のテクニカルレプリケートで評価しました。バーは平均値 ± SDを示します。(B)細胞はエレクトロポレーション後7日目にフローサイトメトリーで解析しました。PD1発現を誘導するため、T細胞をPMA(phorbol 12-myristate 13-acetate)およびイオノマイシン存在下で48時間培養しました。CD52およびTCRα/βの発現は非刺激細胞で評価しました。編集細胞およびモックエレクトロポレーション(EP)細胞における各マーカー陰性細胞の割合を、生細胞中の割合として算出しました。T細胞ドナー2名について、2~3回のテクニカルレプリケートで評価しました。バーは平均値 ± SDを示します。
Application notes
Posters
-
Performance and modularity of Revvity's Pin-point base editing system characterized by arrayed and pooled screening platforms - poster
-
Pin-point™ base editing system: a versatile editing platform driving cell therapies - poster
-
The Pin-point™ base editing platform streamlines the generation of hypoimmunogenic iPSCs for allogeneic cell therapy - poster
Safety data sheets
Selection guides
Short protocols
-
Pin-point™ CBE base editing in HEK293T and T cells, Neon Electroporation – Short Protocol
-
Pin-point™ ABE base editing in HPSCs – Short Protocol
-
Pin-point™ ABE base editing in iPSCs – Short Protocol
-
Pin-point™ ABE base editing in T cells – Short Protocol
-
Pin-point™ CBE base editing in HEK293T and T cells, Lonza 4D-Nucleofection – Short Protocol
-
Pin-point™ CBE base editing in HPSCs – Short Protocol
-
Pin-point™ CBE base editing in iPSCs – Short Protocol
Related Products
Revvity’s Pin-point™ base editing design tool makes it simple to create base editing sgRNAs that deliver reliable, high-efficiency gene knockouts.
Pin-point塩基編集を評価するためのNon-targeting化学合成コントロール。バイオインフォマティクスに基づき、ヒトゲノムのどの遺伝子も標的としないように設計されています。
DNAの二本鎖切断を誘発することなく、正確な遺伝子編集を行うための最適なパラメータを検証するための、化学合成sgRNAコントロール